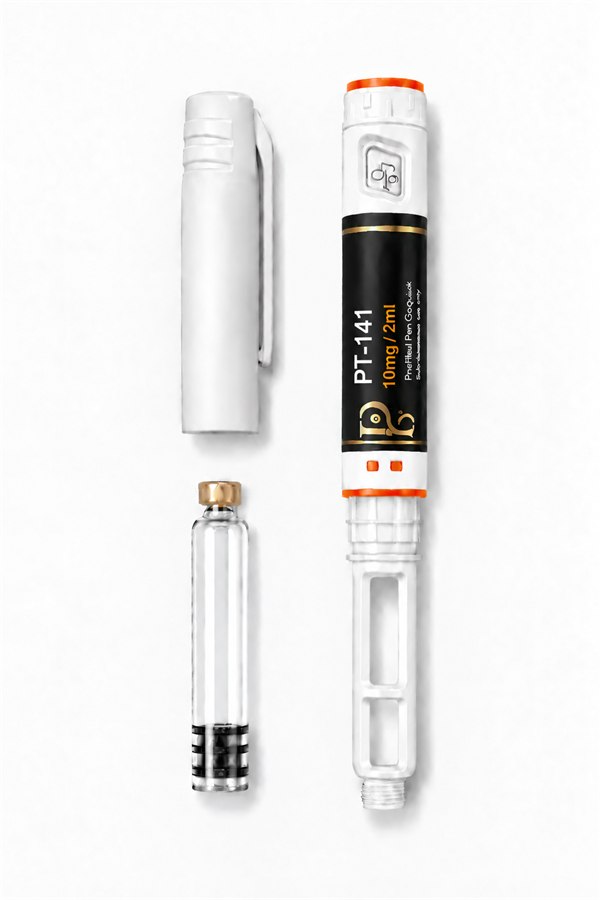
PT-141 wyrósł z badań nad opalaniem, a skończył jako lek dopuszczony w USA. Jak działa receptor MC4, co pokazały badania RECONNECT i dlaczego efekt jest skromniejszy, niż sugeruje marketing.
Czytaj dalej →Mechanizmy działania, przeglądy literatury naukowej i praktyczne porównania peptydów badawczych z naszej oferty.
PT-141 wyrósł z badań nad opalaniem, a skończył jako lek dopuszczony w USA. Jak działa receptor MC4, co pokazały badania RECONNECT i dlaczego efekt jest skromniejszy, niż sugeruje marketing.
Czytaj dalej →
Jedna nazwa, dwa okresy półtrwania: 30 minut albo tydzień. Czym jest DAC, dlaczego zmienia fizjologię, a nie tylko wygodę, i dlaczego połowa tekstów o CJC-1295 opisuje nie tę cząsteczkę.
Czytaj dalej →
Dwie zmiany w sekwencji uwalniają IGF-1 spod kontroli białek wiążących i wydłużają jego życie z minut do godzin. Skąd się wziął IGF-1 LR3, co się w nim bada i gdzie kończą się dane.
Czytaj dalej →
Dwie zmiany w sekwencji i łańcuch kwasu tłuszczowego zamieniły hormon żyjący dwie minuty w cząsteczkę na tydzień. Co wykazały programy STEP i SELECT — i co dzieje się po odstawieniu.
Czytaj dalej →
Ta sama cząsteczka bywa dostępna w kilku mocach. Co oznacza liczba na etykiecie, dlaczego objętość ma znaczenie i kiedy zmiana preparatu w środku serii niszczy porównywalność.
Czytaj dalej →
Glutation, NAD+ i resweratrol w jednej formulacji. Co każdy robi mechanistycznie, dlaczego ich materiał dowodowy tak bardzo się różni i ile kosztuje mieszanka w możliwości interpretacji.
Czytaj dalej →
Podać hormon bezpośrednio albo poprosić przysadkę o uwolnienie własnego. Różnica decyduje zarówno o wielkości efektu, jak i o tym, co dzieje się z własną regulacją organizmu.
Czytaj dalej →Skalowanie dawki, trafność modelu, błąd publikacyjny i zależna replikacja. Dlaczego obiecujące wyniki przedkliniczne tak rzadko się bronią — i jak czytać je lepiej.
Czytaj dalej →
Glukagon podnosi poziom cukru. Wbudowanie go w peptyd metaboliczny brzmi na opak — oto rozumowanie, które za tym stoi, co pokazują dane z II fazy i gdzie kończą się dowody.
Czytaj dalej →
GIP długo uchodził za nieistotny hormon inkretynowy. Tirzepatyd zbudowano na odwrotnym założeniu — i zadziałało. Mechanizm, dowody i to, co wciąż pozostaje niejasne.
Czytaj dalej →
MGF to wariant składania, LR3 zaprojektowany analog, a IGF-1 oryginał. O białkach wiążących, okresach półtrwania i o tym, dlaczego profil czasowy jest tu całym sednem.
Czytaj dalej →Miostatyna hamuje wzrost mięśni. Dwa sposoby jej zablokowania, dwa różne problemy z selektywnością — i przerwane badanie II fazy bardziej pouczające niż dane o skuteczności.
Czytaj dalej →
Zamiast podawać prekursory NAD+, można zahamować enzym odprowadzający nikotynamid. O NNMT, bilansie grup metylowych i tym, co pokazują dane z gryzoni.
Czytaj dalej →
Trzy cząsteczki w tym samym szlaku, nieustannie mylone. O szlaku ratunkowym, o tym, dlaczego NAD+ nie przenika przez błony i co naprawdę pokazały badania u ludzi.
Czytaj dalej →
Wszystkie trzy wiążą receptor greliny, ale różnią się siłą i selektywnością. Przegląd tego, co wpływ na kortyzol, prolaktynę i apetyt oznacza dla doświadczenia.
Czytaj dalej →
Analog GHRH plus agonista receptora greliny to jedno z nielicznych połączeń peptydowych o realnej logice farmakologicznej. O amplitudzie, częstotliwości i hamulcu somatostatynowym.
Czytaj dalej →Chromatogram HPLC, widmo masowe, numer partii i data. Co każdy element faktycznie pokazuje i jakie pominięcia czynią certyfikat bezwartościowym.
Czytaj dalej →
Dwa peptydy regeneracyjne o różnym działaniu bada się często razem. O tym, czy mechanizmy naprawdę się uzupełniają — i dlaczego brakuje danych o połączeniu.
Czytaj dalej →
GLP-1, GIP i glukagon: co mechanistycznie różni semaglutyd, tirzepatyd i retatrutyd, co pokazują badania i gdzie kończy się materiał dowodowy.
Czytaj dalej →Temperatura, światło, czas po przygotowaniu i błędy, które kosztują najwięcej. Konkretne procedury dla liofilizatu, gotowych roztworów i wstrzykiwaczy.
Czytaj dalej →
Dwa spokrewnione peptydy o zupełnie różnej selektywności. O MC1R i MC4R, o tym, jak PT-141 powstał z obserwacji, która nie była celem, i o tym, co jest udowodnione.
Czytaj dalej →Hydroliza, utlenianie, deamidacja, agregacja i cykle zamrażania. Przegląd tego, co faktycznie rozkłada peptyd i co można z tym zrobić.
Czytaj dalej →
Epitalonowi przypisuje się aktywację telomerazy. Czym są telomery, dlaczego takie twierdzenie byłoby niezwykłe i dlaczego materiał dowodowy nie unosi nakładanego nań ciężaru.
Czytaj dalej →
Fragment to koniec C-końcowy hormonu wzrostu, wyodrębniony dla działania lipolitycznego. O hipotezie, o różnicy między lipolizą a oksydacją i o tym, czego brakuje.
Czytaj dalej →
Tymozyna alfa-1 jest dopuszczona w ponad trzydziestu krajach. Co oznacza dojrzewanie limfocytów T i równowaga Th1/Th2, czego dotyczy dopuszczenie — i czego nie dotyczy.
Czytaj dalej →
MOTS-c nie jest kodowany przez jądro komórkowe, lecz przez własny genom mitochondrium. Co to oznacza, jak opisywany jest mechanizm AMPK i jak daleko zaszły badania.
Czytaj dalej →
GHK-Cu to tripeptyd związany z miedzią, którego stężenie spada z wiekiem. Przegląd mechanizmu kolagenowego, badań nad ekspresją genów i siły materiału dowodowego.
Czytaj dalej →Różnica między produktem leczniczym, narkotykiem a odczynnikiem badawczym, co prawnie oznacza „wyłącznie do celów badawczych” i co obowiązuje przy imporcie.
Czytaj dalej →
TB-500 to aktywny fragment tymozyny beta-4. Co wiązanie aktyny oznacza dla migracji komórek, czego faktycznie dotyczyły badania kliniczne i gdzie przebiega granica.
Czytaj dalej →
Czym jest BPC-157, jak opisywany jest jego mechanizm działania i co badania nad gojeniem ścięgien, mięśni i jelit faktycznie pokazują. Przegląd bez przesady.
Czytaj dalej →